Executive Summary
예쁜꼬마선충은 흙 속에 사는 몸길이 1밀리미터짜리 벌레다. 신경세포가 302개뿐이라, 어느 세포가 어느 세포와 이어져 있는지를 하나도 빠짐없이 그려 낸 첫 동물이 됐다. 그 연결 지도를 커넥톰이라 부른다. 진화가 오랜 시간에 걸쳐 다듬어 놓은 배선이니 그대로 옮겨 AI 회로로 쓰면 아무렇게나 엮은 회로보다 나을 것이라는 기대가 이 분야에 오래 있었다. 노르웨이 외스트폴 응용과학대의 펠릭스 라이머스와 스테파노 니켈레를 비롯한 네 명이 9월 24일 arXiv에 올린 논문은 그 기대를 시험대에 올렸다. 이 글은 그 시험이 무엇을 내놓았는지를 본다.
연구진은 커넥톰 22개를 저장소 컴퓨팅이라는 틀에 거의 손대지 않고 집어넣었다. 회로 자체는 학습시키지 않고 회로가 뱉어낸 신호를 읽는 작은 출력부만 훈련하는 방식이라, 배선의 성질이 성적에 비교적 또렷하게 드러난다. 같은 크기로 무작위로 다시 엮은 대조군 세 종류를 세워 놓고 다섯 과제를 겨루게 했다. 실제 배선이 이긴 과제는 기억 하나뿐이었고 나머지는 무작위가 앞서거나 차이가 없었다. 그 하나의 승리마저 뇌 지도를 어떤 방법으로 측정했는지, 성적을 어떤 지표로 매겼는지에 따라 사라졌다.
1절부터 4절까지는 논문에 적힌 내용이다. 5절은 그 내용에서 이 글이 끌어낸 해석이다.
주요 수치
출처: Reimers 외, arXiv:2609.30508 본문 결과절과 표 1·표 2.
5개 중 1개
실제 배선이 앞선 과제
기억 용량 하나뿐이었다. 혼돈 시계열 예측 두 과제에서는 무작위가 앞섰고, 나머지 둘은 대조군에 따라 갈렸다
22개
회로가 된 신경 지도
개체 8마리에서 뽑은 7개 발달 시점을 세 가지 측정 방식으로 각각 그린 것이다. 뉴런은 지도마다 180개
+0.35 → −0.20
측정 방식이 뒤집은 부호
같은 기억 과제인데 시냅스 개수로 그린 지도는 원본이 앞서고, 물리적 접촉 지도는 무작위가 앞섰다
7 → 0
지표를 바꾸자 남은 승수
상관계수로 매기면 7개 나이 구간 전부에서 원본이 앞섰는데, RMSE로 바꾸자 한 구간도 남지 않았다
벌레의 뇌를 그대로 회로에 심었다
보통의 신경망은 배선의 세기를 학습으로 정한다. 데이터를 흘려 보내며 수십만 개의 연결 하나하나를 조금씩 고쳐 나가는 방식이다. 저장소 컴퓨팅은 그 순서를 뒤집는다. 뒤엉킨 회로를 하나 만들어 두고 그 안의 연결은 처음 모습으로 고정한 채, 회로가 입력에 반응해 만들어 낸 신호만 받아 읽는 작은 출력부를 훈련한다. 회로는 입력을 시간축으로 흩뿌려 주는 역할만 한다. 학습이 닿지 않는 만큼 회로의 배선 구조가 성적에 남는다.
이 구조에 커넥톰은 유난히 잘 맞는다. 어느 세포가 어느 세포로 이어지는지를 적은 표가 곧 회로의 인접행렬이기 때문이다. 연구진이 한 전처리는 행렬의 스펙트럴 반경이 1이 되도록 크기를 맞춘 것 정도였다. 회로가 발산하지도 금세 잦아들지도 않게 하는 최소한의 조정이다. 그러고는 에코 스테이트 네트워크라는 이름의 순환 신경망 자리에 앉혔다.
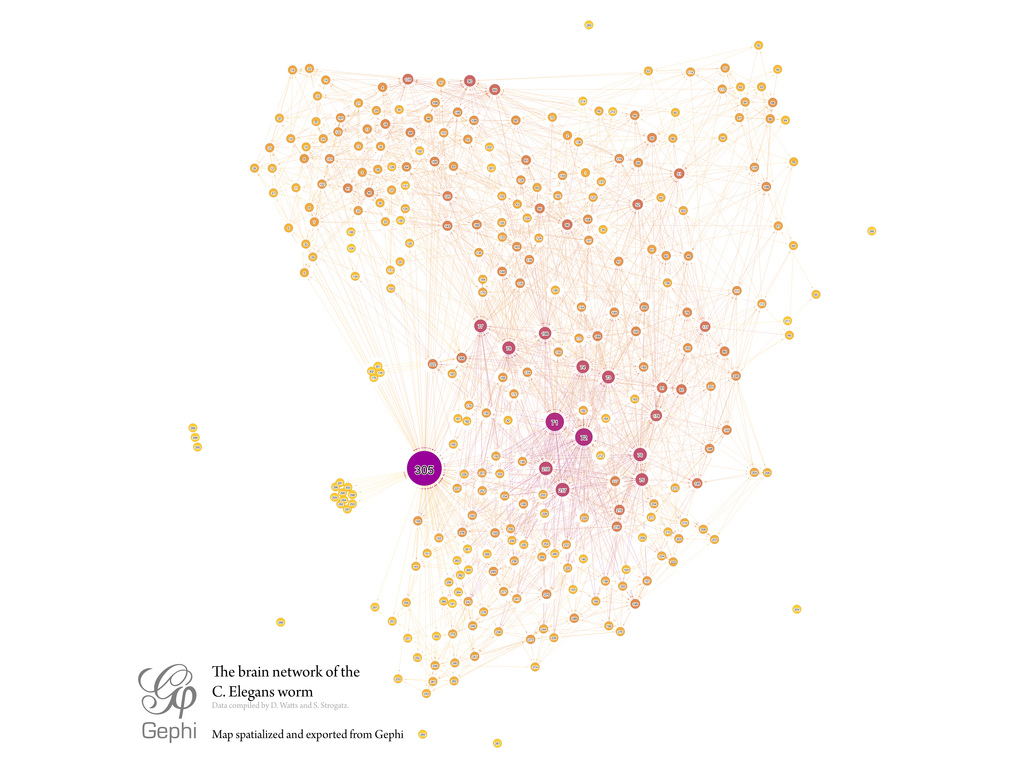
쓰인 지도는 비트블리엣 등이 2021년에 공개한 것이다. 유전적으로 같은 예쁜꼬마선충 여덟 마리를 발달 단계별로 갈라 전자현미경으로 훑은 자료로, 부화 직후 애벌레 시기 네 시점(L1.1부터 L1.4까지)과 L2, L3, 그리고 성체 두 마리를 담고 있다. 지도 하나에 들어간 것은 뇌 뉴런 180개에 체벽근육과 아교세포, 배설관 연결 뉴런 두 개를 더한 것이다. 신경세포 302개를 모두 담은 지도가 아니라 머리 쪽 뇌를 재구성한 자료이므로, 회로가 된 범위도 거기까지다.
같은 개체를 세 가지 방법으로 각각 측정했다는 점이 이 자료의 특징이다. 시냅스를 몇 개 이어 붙였는지 세는 방법, 그 시냅스의 접합부가 얼마나 큰지 재는 방법, 그리고 두 세포가 실제로 맞닿은 면적을 구하는 방법이다. 앞의 둘은 신호가 흐르는 방향이 있는 지도가 되고, 마지막 하나는 방향이 없는 지도가 된다. 세 방법을 발달 시점마다 적용해 모두 22개의 지도가 나왔다. 성체 한 마리는 시냅스 크기와 물리적 접촉 자료가 없어 8개가 아니라 7개씩이다.
회로에 신호를 넣고 빼는 자리도 생물을 따랐다. 입력은 감각뉴런 가운데에서, 출력은 체벽근육 가운데에서 골랐다. 벌레가 바깥을 느끼고 몸을 움직이는 경로를 옮긴 셈이다. 다만 이 선택이 유리한지 확인하려면 다른 선택도 있어야 하므로, 연구진은 입출력 자리를 바꿔 가며 다섯 가지 구성을 돌렸다. 첫 둘은 감각과 근육이라는 생물학적 구분을 지켰고, 나머지 셋은 그 구분을 풀고 각 무리의 30퍼센트·50퍼센트·80퍼센트를 입출력으로 삼았다.
과제는 다섯이다. 기억 용량은 최대 스무 시간 단계 전에 들어온 신호를 다시 뱉어 내게 하는 과제다. 에농 지도와 맥키-글래스는 혼돈 시계열의 다음 값을 맞히는 과제이고, 지각적 판단은 두 시계열 가운데 평균이 큰 쪽을 고르는 과제다. Go/No-go는 신호가 왔는지 안 왔는지만 답하면 된다. 과제마다 무작위로 뽑은 문제 15묶음을 미리 저장해 두고, 그중 70퍼센트로 출력부를 훈련한 뒤 나머지 30퍼센트로 채점했다.
배선보다 입출력 자리가 성적을 더 움직인다
비교 대상이 될 무작위 회로는 세 가지로 만들었다. 첫째는 나가는 연결의 개수 분포는 그대로 두고 연결이 닿는 자리만 다시 엮은 것이다. 입출력 노드는 원래와 같은 무리에서 고른다. 둘째는 배선을 원래대로 두고 입출력 노드만 전체에서 무작위로 고른 것이다. 셋째는 둘 다 무작위다. 비교할 때마다 각 대조군을 15번씩 새로 뽑아, 한 번 운 좋게 잘 나온 회로가 결과를 끌고 가지 않게 했다.
성적은 베타 회귀로 모아 원본과 대조군의 차이를 계수 하나로 요약했다. 값이 양수면 실제 배선이 앞섰다는 뜻이고 음수면 무작위가 앞섰다는 뜻이다. 아래가 다섯 과제와 세 대조군을 교차한 결과다.
표를 가로로 읽으면 기억 용량 한 줄만 주황색이다. 실제 배선은 이 과제에서 세 대조군을 모두 이겼고, 대조군이 원본에서 더 멀어질수록 격차가 벌어졌다. 나머지 네 줄에는 주황이 없다. 두 혼돈 시계열 과제에서는 어느 대조군을 세워도 무작위 쪽이 앞섰고, 에농 지도에서는 차이가 특히 컸다. 지각적 판단은 어느 쪽도 이기지 못했다.
Go/No-go 줄은 세로로 읽어야 뜻이 잡힌다. 배선만 흐트러뜨렸을 때는 차이가 뚜렷하지 않았는데(+0.282, p=.065), 입출력 노드까지 무작위로 고르자 대조군 쪽이 분명히 앞섰다(−0.386, p=.010). 맥키-글래스 줄에서도 두 번째 칸만 부호와 유의성이 다르다. 논문이 이 대목에서 내린 판단은 이렇다. 입출력 노드를 무작위로 고르는 일이 배선 자체를 다시 엮는 일보다 성능에 더 크게 작용하는 것으로 보인다.
여기서 무너진 것은 배선의 우위만이 아니다. 감각뉴런에서 받아 근육으로 내보낸다는, 벌레가 실제로 쓰는 입출력 배치도 함께 밀렸다. 회로 안쪽을 어떻게 엮었는가보다 회로의 어디를 붙잡고 읽었는가가 성적을 더 많이 좌우했다는 뜻이다. 다만 논문은 반대쪽 단서도 남겼다. 쓸 수 있는 입출력 노드 수가 빠듯할 때는 생물이 정해 준 자리를 쓰는 편이 유리할 수 있다고 본다.
논문이 결론에 적은 문장은 승패보다 한 걸음 물러서 있다. 생물학적 배선과 생물학적 입출력이 이점인지 약점인지는 커넥톰의 종류, 회로 구성, 쓰인 과제, 그리고 성능을 매긴 지표에 달려 있다는 것이다. 뒤에 붙은 네 가지가 이 논문에서 가장 무거운 부분이다.
그 네 가지 중 과제에는 미리 알아 둘 점이 하나 있다. 다섯 과제는 벌레에게서 온 것이 아니다. 대부분 뉴로짐(neurogym)이라는 계산신경과학 과제 꾸러미에서 가져왔고, 하나는 커넥톰을 저장소로 쓰는 도구인 conn2res에 들어 있던 것이다. 혼돈 시계열의 다음 값을 맞히는 일은 흙 속의 벌레가 살면서 할 일이 아니다. 그러니 이 실험이 답한 것은 벌레의 배선이 좋은 회로인가가 아니라, 벌레의 배선이 이 다섯 시험지에서 좋은 점수를 받는가에 가깝다.
측정 방법을 바꾸면 결론의 부호가 뒤집힌다
1절에서 말한 세 가지 측정 방법은 같은 벌레의 같은 신경계를 대상으로 한다. 그런데 나오는 그래프가 서로 다르다. 시냅스를 기준으로 그린 두 지도는 벌레가 자랄수록 연결이 늘어난다. 앞으로 보내는 연결이 많아지고 회로가 덩어리로 나뉘는 정도도 커진다. 반면 세포끼리 맞닿은 면적을 담은 지도는 발달 내내 거의 그대로다. 사이뉴런 회로만 놓고 보면 시냅스 지도에서도 변화가 적다.
방향성도 다르다. 시냅스 지도에는 신호가 흐르는 방향이 적혀 있지만, 접촉 면적 지도는 양방향이다. 회로로 옮기면 한쪽은 비대칭 행렬이 되고 다른 쪽은 대칭 행렬이 된다. 같은 개체에서 뽑았다는 이유로 이 셋을 한데 묶어 평균 내면, 서로 다른 방향의 결과가 상쇄돼 아무 일도 없었던 것처럼 보인다. 연구진이 세 방법을 따로 분석한 이유가 여기 있다.
갈라 보니 실제로 부호가 뒤집혔다. 아래는 원본이 유일하게 이겼던 기억 용량 과제를, 측정 방법과 채점 지표로 다시 나눈 것이다. 나이 구간 일곱 개마다 원본과 대조군을 견주어 어느 쪽이 앞섰는지를 세었다.
왼쪽 칸만 봐도 결론이 하나가 아니다. 시냅스 개수로 그린 지도에서는 일곱 구간 전부 원본이 앞섰고, 구간별 대비의 평균은 +0.35였다. 시냅스 크기 지도에서도 다섯 구간에서 원본이 앞섰다. 그런데 물리적 접촉 지도에서는 일곱 구간이 모두 반대였고, 대비의 평균은 −0.20이었다. 같은 과제, 같은 벌레, 같은 회로 구성이다. 다른 것은 신경계를 무엇으로 측정했는가뿐이다.
오른쪽으로 넘어가면 남아 있던 우위도 없어진다. 상관계수 대신 예측 오차인 RMSE로 같은 성적을 다시 매기자, 시냅스 지도가 대조군보다 낫다는 결과 자체가 사라졌다. 일곱 구간 중 원본이 앞선 곳은 하나도 없었다. 논문은 이 과제에서 대비의 크기가 원래 작았다는 단서를 함께 달아 두었다. 뒤집힐 만큼 얇은 우위였다는 뜻이기도 하다.
논문이 여기서 확인했다고 적은 것은 성능 순위가 아니라 가정 하나다. 물리적 접촉 커넥톰과 두 시냅스 커넥톰 사이에서 결과의 부호가 뒤집힐 수 있다는 가정이 사실로 드러났다. 결론을 바꾼 것은 벌레도 아니고 회로도 아니다. 그 벌레를 기록하는 데 쓰인 방법이었다.
회로 구성에서도 같은 흔들림이 나타났다. 연결망 종류와 회로 구성을 교차한 항, 연결망 종류와 커넥톰 종류를 교차한 항이 모든 과제에서 강하게 유의했다. 기억 용량 과제의 경우 커넥톰 종류와의 교호작용이 χ²=534.37, 회로 구성과의 교호작용이 χ²=332.48로 나왔다. 평균 한 줄로 요약하면 안 되는 자료라는 신호다.
같은 벌레의 커넥톰을 두고 다른 답을 내놓은 연구도 올해 함께 나왔다. 처칠랜드 등 여섯 명은 9월 7일 논문에서 성적 대신 흔들림을 쟀다. 스펙트럴 반경과 입력 크기, 누출률, 뉴런 편향을 훑어 가며 지표가 얼마나 요동치는지를 변동계수로 본 것이다. 예쁜꼬마선충 커넥톰은 여러 실험을 통틀어 변동이 작은 자리에 일관되게 놓였다. 대신 과제와 무관한 성능이 높은 구조일수록 하이퍼파라미터에 더 민감했고 일반화도 나빴다. 최고 점수를 점수로 삼느냐 흔들리지 않는 것을 점수로 삼느냐에 따라, 같은 배선이 다른 평가를 받는다.
6월에 나온 구라가인 등의 논문은 방향이 아예 반대다. 여섯 종의 커넥톰을 저장소로 놓고 연결의 세기를 기울기 없는 생물 모사 최적화 기법 네 가지로 다듬었더니 어느 종 어느 과제에서나 생물 기본값보다 좋아졌고, 같은 연결 구조 위에 세기만 무작위로 채운 쪽은 생물 값에 꾸준히 밀렸다. 생물의 가중치가 구조만으로는 복원되지 않는 귀납 편향이라는 결론이다. 두 논문이 맞붙는 것처럼 보이지만 무작위로 돌린 대상이 서로 다르다. 이 글이 따라온 논문은 연결이 닿는 자리와 입출력 노드를 다시 엮었고, 저쪽은 구조를 그대로 둔 채 세기 값만 바꿨다. 무엇을 고정하고 무엇을 흐트러뜨렸는지가 다르면 무작위 대조군이라는 같은 이름 아래 다른 실험이 된다.
나이는 방향을 정하지 않았다
이 자료에는 흔치 않은 기회가 하나 더 있었다. 같은 종의 신경계를 부화 직후부터 성체까지 일곱 시점으로 끊어 놓았으니, 신경계가 자라면서 계산 능력도 나아지는지를 직접 확인할 수 있다. 성숙한 회로가 더 나은 회로라는 짐작은 배선 모방 자체보다 더 자연스러워 보인다.
결과는 그 짐작을 받쳐 주지 않았다. 나이가 늘어난다고 성능이 오르지도 내리지도 않았다. 과제별로 보아도, 회로 구성별로 보아도 나이에 따라 비슷하게 그려지는 곡선이 없었다. 논문은 눈에 띄는 경향이 보이지 않는다고 적었다.
구조가 그대로여서 생긴 결과도 아니다. 이 지도를 만든 비트블리엣 팀은 벌레가 자랄수록 뇌가 점점 앞먹임 쪽으로 기울고 덩어리로 나뉘는 정도도 뚜렷해진다고 보고했다. 배선은 방향을 갖고 성숙했는데 그 배선으로 만든 회로의 성적은 방향을 갖지 않았다. 성숙한 구조가 곧 나은 계산이라는 연결이 여기서 끊어진다.
나이가 아무 영향도 주지 않았다는 말과는 다르다. 연결망 종류와 나이를 교차한 항은 통계적으로 강하게 유의했다. 기억 용량 과제에서 χ²=126.87, 에농 지도에서 44.52, 맥키-글래스에서 35.39다. 나이에 따라 원본과 대조군의 격차가 분명히 달라지긴 하는데, 그 달라짐에 방향이 없다. 시점마다 다르되 어디로 가는지는 알 수 없는 모양이다.
모르는 것을 모른다고 적어 둔 대목도 있다. 왜 시냅스 기반 회로가 하필 기억 과제에서 대조군을 앞서는지는 이 논문이 답하지 못했고, 뒷연구로 넘겼다. 회로에서 노드나 연결을 일부 지웠을 때 성능이 어떻게 변하는지도 아직 열려 있는 질문으로 남겼다.
페블러스가 이 논문을 주목하는 이유
지금부터는 이 논문을 데이터 품질의 눈으로 다시 읽는다.
무작위가 이겼다는 결과보다 오래 남는 것은 커넥톰이라는 자료 자체다. 커넥톰은 현장에서 흔히 원본 데이터라 부르는 것과 성격이 똑같다. 자연을 그대로 옮겨 적은 것처럼 들리지만, 실제로는 개체를 고정해 얇게 자르고 전자현미경으로 찍은 뒤 어디까지를 하나의 연결로 볼지 사람이 정한 규칙에 따라 표로 옮긴 결과물이다. 세 가지 측정 방법은 그 규칙이 세 벌이라는 뜻이고, 그 셋이 서로 다른 그래프를 낳았다.
그 차이가 어디까지 번지는지를 이 논문이 보여 준다. 측정 규칙을 바꾸자 성능 비교의 승패가 뒤집혔다. 채점 지표를 바꾸자 남아 있던 우위도 없어졌다. 벌레는 한 마리였고 회로도 같았다. 자연의 성질이라고 부르던 것 가운데 얼마가 실은 그 자연을 기록한 장비와 규칙의 성질이었는지를, 이 실험은 숫자로 갈라 놓았다.
모델을 서로 비교하는 자리에서 이 문제는 더 조용히 지나간다. 두 모델의 성적을 나란히 놓을 때 우리는 데이터가 같다고 전제한다. 그 전제는 파일이 같으면 성립하는 것이 아니라 그 파일이 만들어진 절차가 같아야 성립한다. 같은 이름의 라벨이라도 지침이 개정되기 전과 후가 다르고, 주석자가 바뀌기 전과 후가 다르며, 애매한 사례를 버린 쪽과 남긴 쪽이 다르다. 그 차이는 파일 안에 보이지 않게 들어앉아 있다가 순위표에서만 모습을 드러낸다.
페블러스가 앞서 다룬 사례들도 같은 자리를 가리킨다. 모델에게 답을 어떤 형식으로 쓰게 하느냐만 바꿨는데 데이터 품질 점수가 흔들린 연구가 있었고, 편향을 잰다고 만든 검사가 정작 추론 실력을 재고 있던 사례도 있었다. 이상 탐지 벤치마크의 시험지 안에 같은 행이 정답과 오답 양쪽에 들어 있던 일도 다뤘다. 겹치는 대목은 하나다. 무엇을 측정했는지 적어 두지 않은 데이터는 어떤 결론이든 받쳐 줄 수 있다.
그래서 남는 질문은 이렇다. 우리가 자연을 모방한 구조라고 부르는 것은 자연의 성질인가, 아니면 그 자연을 측정한 장비와 규칙의 성질인가. 앞이라면 더 정교하게 베끼면 되고, 뒤라면 아무리 정교하게 베껴도 장비를 베끼는 셈이 된다. 둘을 가르려면 새 모델이 아니라, 데이터가 어떤 절차로 만들어졌는지를 적어 둔 기록이 필요하다. 이 논문에는 그 기록이 세 가지 있었기에 부호가 뒤집히는 것을 볼 수 있었다.
여기까지 읽어 주셔서 감사하다. 이 글이 따라간 논문은 arXiv:2609.30508에서 전문을 볼 수 있고, 쓰인 커넥톰 자료는 비트블리엣 외(2021)가 공개한 것이다. 여러분의 팀에서 모델 둘을 견주고 있다면, 두 실험이 쓴 데이터가 같은 절차로 만들어졌는지 한 번 확인해 보시고 이야기를 들려주시면 좋겠다.
참고문헌
- 1.Reimers, F. S., Ramstad, O. H., Hubin, A., & Nichele, S. (2026). "Benchmarking the Connectomes of Caenorhabditis elegans within the Reservoir Computing Framework." arXiv:2609.30508.
- 2.Churchland, M. W., de Palma Aristides, R., Garcia-Ojalvo, J., Ritz, A., Anderson, G., & Soriano, M. C. (2026). "Determinants of hyperparameter robustness in connectome reservoir computing." arXiv:2609.07355.
- 3.Guragain, A., Kakalis, S., & Godino-Llorente, J. I. (2026). "The Whale That Outswam Evolution: Swarm Intelligence Maximises Memory in Connectome Reservoirs." arXiv:2606.09902.
- 4.Witvliet, D., Mulcahy, B., Mitchell, J. K. et al. (2021). "Connectomes across development reveal principles of brain maturation." Nature, 596, 257–261.